一个等了三十二年的酶基因,终于在斑马鱼身上被钓出来
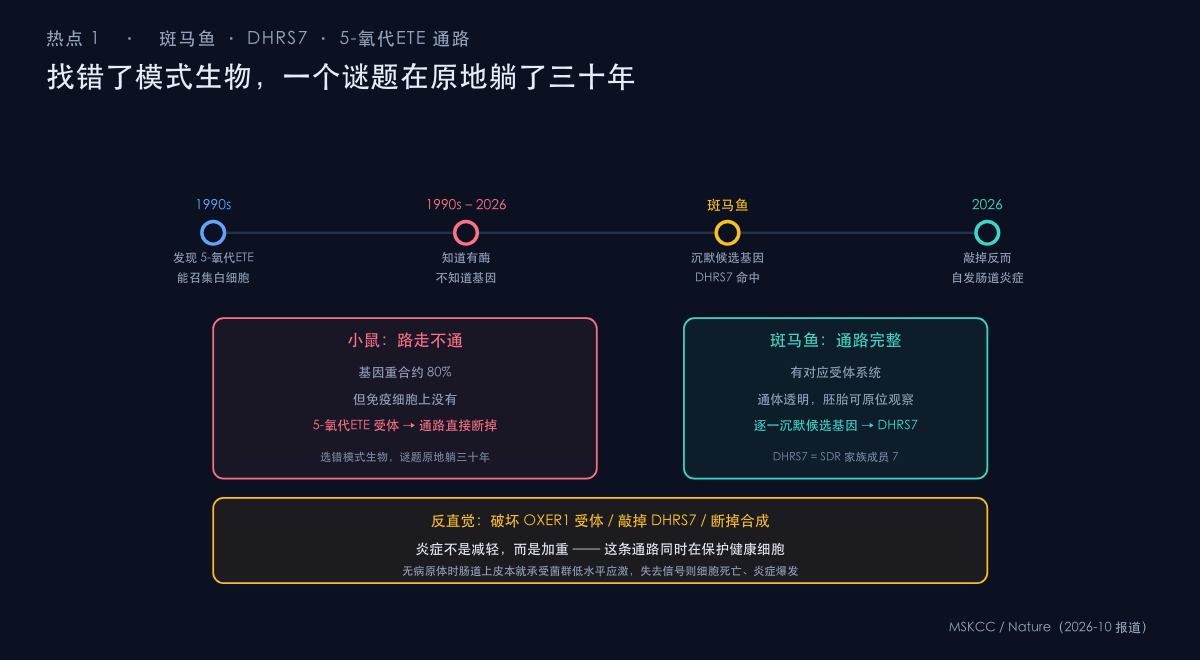
这是一个典型的"差一步三十年"的案例。上世纪 90 年代,科学家发现了一种叫 5-氧代ETE(5-oxoETE,5-oxo-5,8,10,12-eicosatetraenoic acid)的脂质介质:当细菌入侵时,它能召集白细胞赶到现场执行免疫功能。问题在于,众所周知有酶负责合成它,但没人知道编码这个酶的基因。
没有基因信息,就没有工具。你不能把它敲低、不能把它过表达、不能在模式生物里复现或推翻这条通路的任何说法。于是这个谜就在桌上放了三十多年。
为什么小鼠走不通
标准流程本来应该顺畅:找到候选基因 → 在小鼠里敲除 → 观察免疫表型。问题出在小鼠身上。小鼠和大鼠的基因与人类大约 80% 重合,免疫研究几乎都从它开始。但这条人类炎症通路在小鼠身上根本接不上——小鼠免疫细胞上没有 5-氧代ETE 的受体。受体不在,整条通路就是断的。
转向斑马鱼,找到 DHRS7(脱水酶/还原酶 SDR 家族成员 7)
团队改用了斑马鱼作为模式生物。原因很实际:斑马鱼是少数几种拥有与人类相当的 5-氧代ETE 受体系统的脊椎动物模型,而且通体透明,成体可观察,胚胎可以原位检测,非常适合"看到信号从哪儿来、往哪儿去"。
他们在斑马鱼细胞里逐一沉默候选基因。破坏其中一个叫 DHRS7(Dehydrogenase/reductase SDR family member 7,脱水酶/还原酶 SDR 家族成员 7)的基因时,合成 5-氧代ETE 的酶活性消失了。用这条信息反过来查小鼠,发现缺失这条通路的小鼠几乎不表达 DHRS7——两条独立的证据链对上,DHRS7 就是他们要找的那个基因。
更意外的发现:这条通路也在"保护"
更有意思的部分在下一步。团队用斑马鱼的结肠炎模型研究这个基因的功能,破坏受体基因 OXER1(5-氧代ETE 受体 1)。按逻辑推理:丢了受体,炎症信号传不过去,炎症应该减轻。实际结果是反的——斑马鱼反而出现了自发性肠道炎症。
他们换了几种方式重复验证,包括直接敲除 DHRS7、让斑马鱼彻底无法合成 5-氧代ETE。结果一致:全都导致炎症水平升高。
这说明 5-氧代ETE 这条通路的作用远不止"传递免疫警报"。研究给出的解释是:在没有外来病原体时,肠道上皮细胞本身就长期暴露在正常菌群带来的低水平应激下。如果没有 5-氧代ETE 信号及其受体,这些健康细胞就会在这种常态压力下死亡,炎症随之爆发。换句话说,这条炎症信号通路同时是一道保护健康细胞的防御机制——炎症这件事不仅是"坏处",它本身也在维持屏障与细胞存活。
这个结论对理解炎症性肠病、哮喘这类"炎症失控"疾病有直接意义:问题可能不只是炎症跑得太快,而是保护性的那一半也一起失灵了。
这篇研究的一个方法学教训同样值得记住:选错模式生物,会让一个可解的谜题在原地躺三十年。人类炎症通路在小鼠身上断掉,不是因为没人想到用小鼠,而是必须承认"这个系统不是每种动物都有",然后去找那个有它的物种。
评论 (0)
正文划词可点「问萝卜特」——自动发评论并由 AI 回复
加载评论中…