植物组织培养原理:从一片叶子到一整株
细胞全能性、脱分化与再分化、激素比值学说、MS 培养基——组培让一个细胞长成整株。
必学必会 · 硬核原理
一片叶子,长成一棵植物:植物组织培养背后的原理
剪下一小段茎尖,或者撕下一片叶子,丢进一个装满胶状培养基的玻璃瓶。几周后,它长出根,长出芽,最后变成一株完整的、能种进土里的植物。这件事第一次被人认真设想,是在 1902 年;第一次真正做成,是 1958 年。中间隔了半个多世纪,卡住的不是想法,而是技术。
植物组织培养要回答的核心问题只有一个:一个已经分化、专门干某件事的细胞,怎么可能退回原点,重新变成一整棵植物?下面把这条原理拆开讲。
一、理论基石:细胞全能性
1902 年,奥地利植物学家哈伯兰特(Gottlieb Haberlandt)提出一个判断:植物的每一个细胞,都带着这物种的全部遗传信息,只要条件合适,单独一个细胞就能长成一株完整的植物。他把这个性质叫做"细胞全能性"(totipotency)。
这个想法很漂亮,但哈伯兰特自己没做成。他试过培养分离的细胞,细胞活了下来,却不肯分裂。问题出在他不知道细胞需要什么:合适的营养,还有关键的植物激素。此后三十年里,怀特(White)在 1934 年用番茄根诱导出愈伤组织,高特雷(Gautheret)在 1935 年往培养基里加了生长素让柳树形成层活了下来。技术一点点攒起来。
真正的突破在 1958 年。斯图尔德(F. C. Steward)和他的团队取了胡萝卜储藏根的韧皮部细胞,先养出愈伤组织,再从里面分离出单个细胞,最终让这些单个细胞长成了完整的胡萝卜植株。哈伯兰特预言了半个多世纪的事,被证实了。
外植体:从植物体上取下的、用于培养的一小块组织,比如一片叶、一段茎尖。图中是中果咖啡(Coffea canephora)叶片上长出的愈伤组织——一团乳白色、无固定形状、能持续分裂的细胞。
二、核心两步:脱分化与再分化
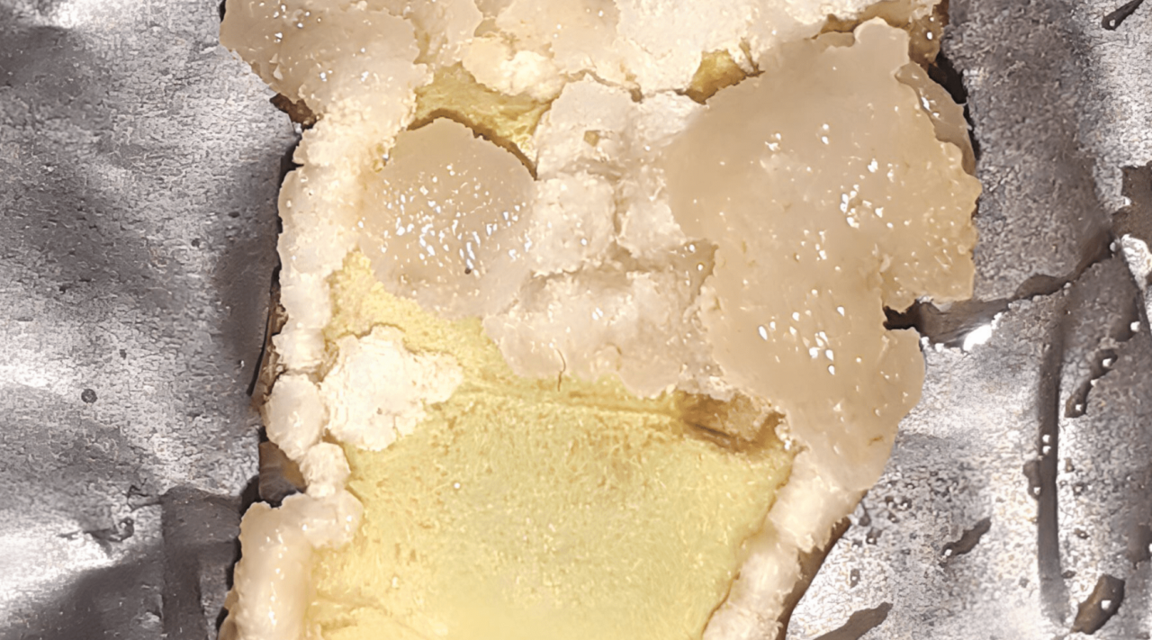
已经分化的细胞要回到"能长成整株"的状态,得先退一步。这个过程叫脱分化(dedifferentiation):细胞丢掉原来的身份特征,比如叶肉细胞不再像叶肉细胞,退回一种能不断分裂、尚未定向的"分生状态"。这些细胞堆在一起,就是我们常说的愈伤组织(callus),一团颜色偏黄白、松软、没有固定形状的细胞团。
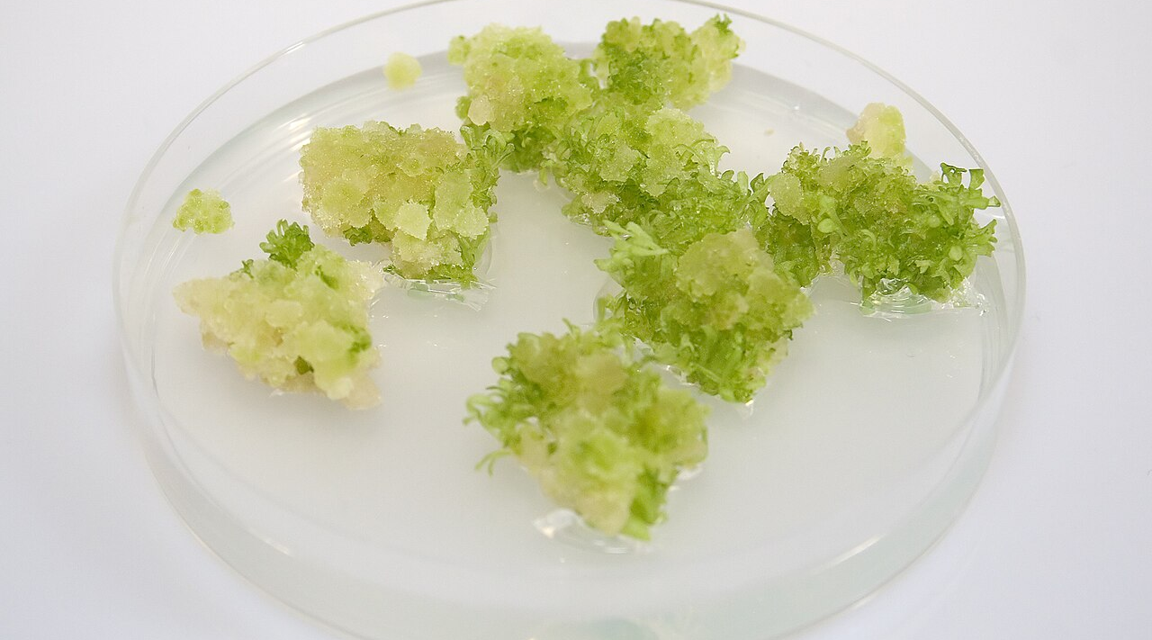
愈伤组织本身不是目标。下一步是再分化(redifferentiation):在合适的信号下,这些未定型的细胞重新决定命运,有的长成根,有的长成芽,有的长成茎,最后拼回一株植物。脱分化是"打回原形",再分化是"重新发育",组织培养的本质就是替细胞安排这两步。
金属箔衬底上的乳白色愈伤组织团块,浅黄部分是残留的培养基与外植体——一团未分化、能持续分裂的细胞,是间接体细胞胚发生的起点。
三、激素是总指挥:Skoog-Miller 比值学说
1957 年,斯库格(Skoog)和米勒(Miller)发现一件关键的事:培养基里两类植物激素的相对比例,决定了细胞往哪个方向走。这两类是生长素(auxin)和细胞分裂素(cytokinin)。
| 激素比例 | 细胞命运 |
| 生长素高 / 细胞分裂素低 | 长根 |
| 细胞分裂素高 / 生长素低 | 长芽 |
| 两者大致均衡 | 维持愈伤组织,继续增殖 |
这套"比值学说"到现在仍是组培配方设计的基础。往培养基里加 2,4-D 这类生长素,常用在诱发愈伤;想让它发芽,就把细胞分裂素(比如 6-BA)的比例提上去。后来的分子研究补上了机制:生长素会诱导 WOX5、WOX7 这样的基因,指向生根;细胞分裂素则调控 WUS,指向长芽。细胞受伤时,受伤信号分子 REF1 被受体 PORK1 识别,激活 WIND1,启动整段重编程。
实验室里调配激素:生长素和细胞分裂素的比例,决定细胞长根还是长芽。
四、培养基:MS 配方
只给激素不够,细胞还要吃饭。1962 年,村重(Murashige)和斯库格(Skoog)为烟草愈伤组织设计了一款培养基,后来被称为 MS 培养基,至今仍是世界上用得最多的配方。它的特点是无机盐浓度高,氮源充足。
MS 的大量元素(单位 mg/L)大致是:硝酸钾 1900、硝酸铵 1650、磷酸二氢钾 170、硫酸镁 370、氯化钙 440。再加上蔗糖 30 克每升,既当碳源和能量,也维持培养基的渗透压;还有肌醇、几种维生素、以及用 EDTA 螯合的铁。培养基调好 pH 到 5.6 到 5.8,加琼脂凝固,高温灭菌后倒进容器。
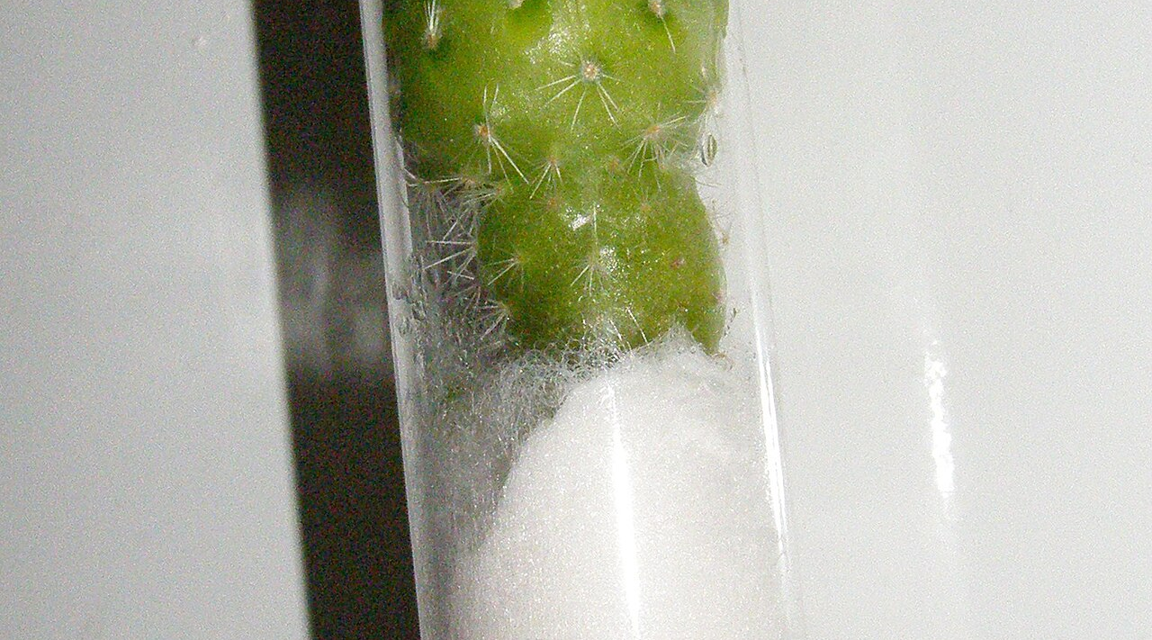
配制 MS 培养基:高盐配方的营养,是细胞脱分化和再分化的底子。
五、两条再生路线
从一块外植体到一株植物,主要有两条路。一条叫器官发生:细胞先形成愈伤,再从愈伤上直接长出根和芽,重新组装成植株。另一条叫体细胞胚发生:体细胞不经过根、芽这些器官阶段,直接发育成胚状体,再长成植株,过程更接近受精卵自然发育成胚。
两条路都能用,选哪条取决于植物种类和你要什么。兰花、香蕉这类靠分株慢的植物,走器官发生快繁最划算;一些林木和作物,体细胞胚发生更适合工厂化生产。
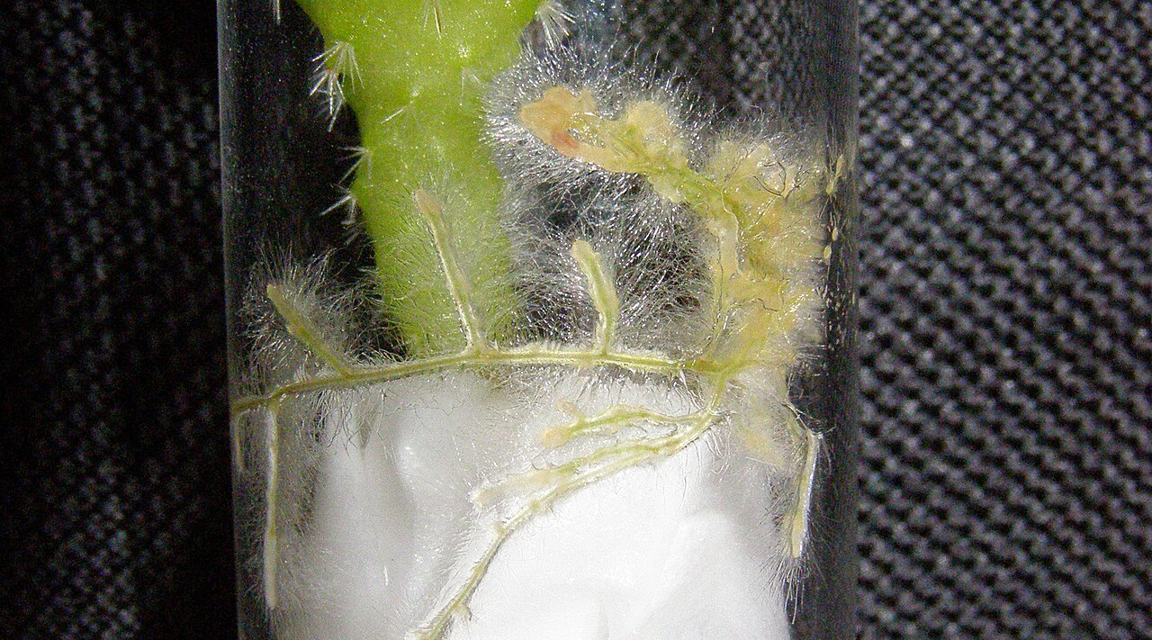
从愈伤组织再分化出的小植株,已经长出根和绿叶。
六、为什么这件事有用
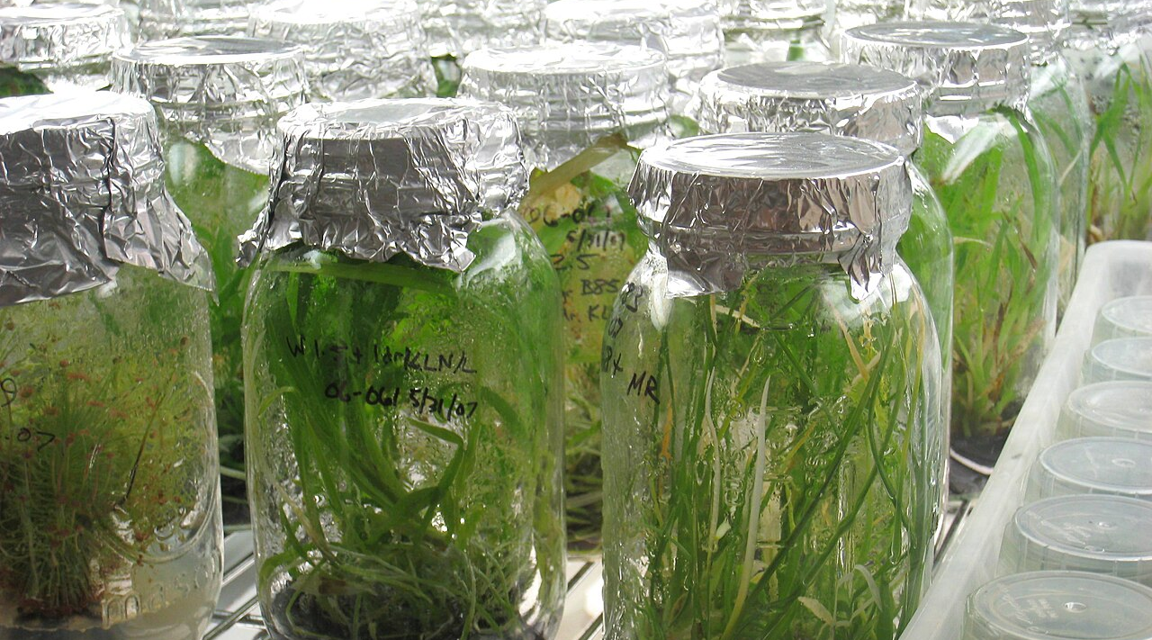
原理讲完,看它能干什么。最典型的是微繁殖(micropropagation):1965 年莫雷尔(Morel)用茎尖培养把兰花工厂化,一个芽在瓶子里一年能变成几万株,直接催生了兰花产业。今天你在花市看到的很多观赏植物、果园里的脱毒种苗,背后都是这套技术。
另一个实用方向是脱毒。病毒在植物体内分布不均,茎尖分生组织几乎不带毒。把极小的茎尖取下来培养,就能得到无病毒的种苗,马铃薯、草莓、果树都在用。花药培养则能拿到单倍体,染色体加倍后得到纯合株,育种周期一下缩短。
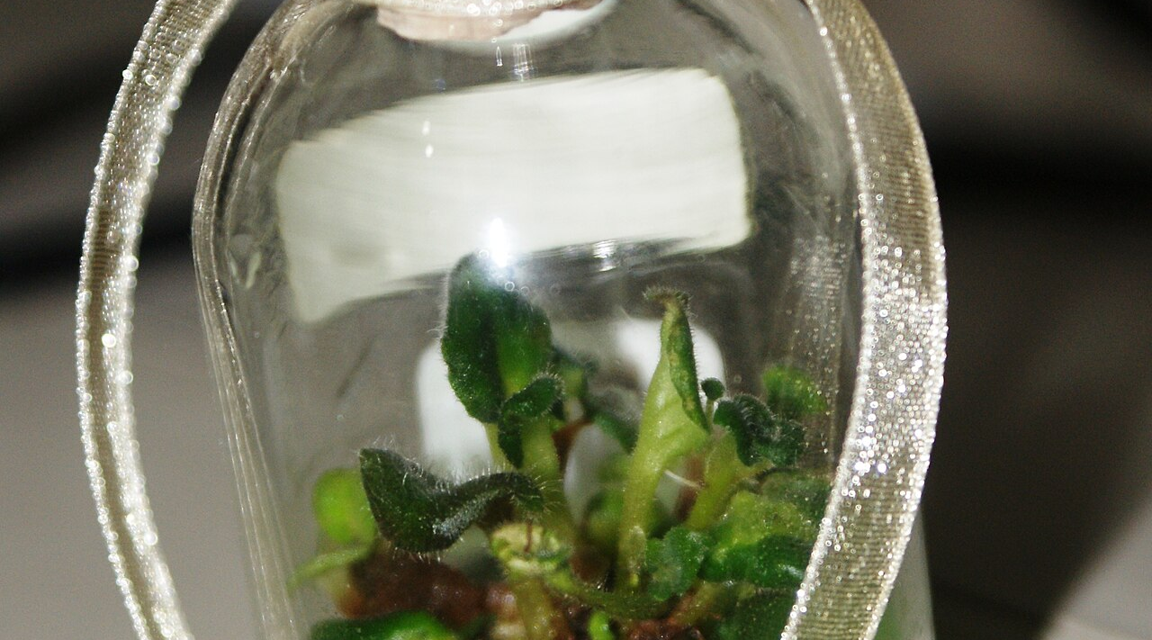
组培苗生产线:同一份优良基因型,可以被放大成成千上万株整齐一致的植株。
七、2025 年,机制被补上了
"一个细胞能长成整株"被证实了几十年,但细胞内部到底怎么发生重编程,一直说不清。2025 年 9 月,山东农业大学张宪省、苏英华团队在《细胞》(Cell)上发表研究,用拟南芥的叶片气孔前体细胞把这个黑箱打开了。
他们发现,SPCH 和 LEC2 两个基因协同构成一个分子开关,触发细胞里生长素大量积累,把普通的体细胞重编程成全能干细胞,进而长成完整植株。借助单细胞测序和活体成像,他们第一次完整拍到单个细胞一步步分裂、变成植株的全过程,直接证明了植物全能性的单细胞起源。从哈伯兰特的预言,到这条分子通路被画出来,跨了 123 年。
组培技术今天已经很平常,瓶子里长植物在实验室里是日常操作。但它底下的原理并不平淡:一套全能性理论,两步脱分化与再分化,一个激素比值开关,一管高盐培养基。把这四样凑齐,植物才肯把一片叶子,重新长成一棵自己。
图片来源:本文题图与配图均来自 Wikimedia Commons,采用 CC BY-SA 授权。
关于必学必会
必学必会是一个把硬核科学讲清楚的知识社区。关注我们,每周拆解一个底层原理。