mTORC1:细胞怎么知道营养够不够
mTORC1 汇总氨基酸、生长因子、能量与应激四类信号,决定细胞把资源投向生长还是维护。本节讲清它的组成、下游支路,以及为什么抑制它能延长多种动物的寿命。
本节你将能
读完这一节,你能说出细胞判断"营养够不够"的三个输入信号,解释 mTORC1 打开翻译机器的一步关键操作,并说明为什么抑制这条通路能延长多种动物的寿命。
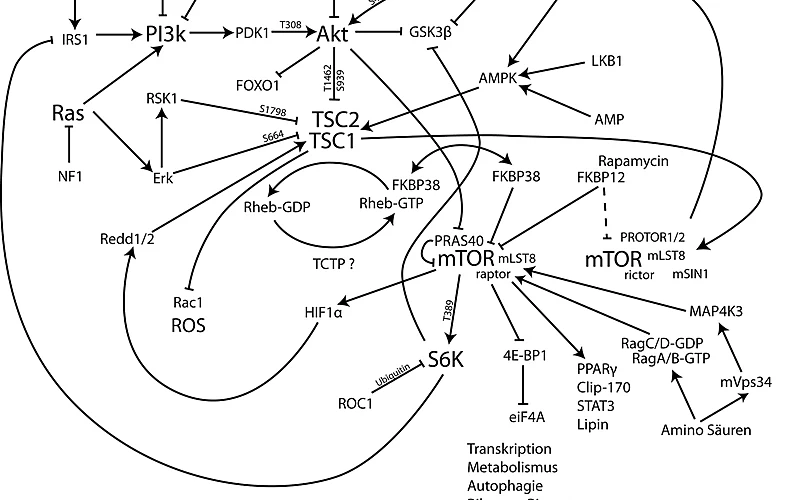
图1:PI3K-AKT-mTOR 信号通路示意(图片来源:Wikimedia Commons)
直觉模型:一座按订单开工的工厂
把细胞想象成一座工厂。工厂最贵的设备是核糖体,占细胞总蛋白合成量的一大半。造核糖体很烧钱,如果原料(氨基酸)供应不稳定却贸然扩产,半成品堆积、能耗失控,工厂会先垮。
所以细胞需要一个能同时看订单、看库存、看电表的调度员。mTORC1 就是这个调度员。它把四条线索汇总成一个决定:现在该不该大量制造蛋白质。
- 氨基酸库存:通过 Rag GTPases 把 mTORC1 拉到溶酶体膜上,那里有它的激活开关 Rheb
- 生长因子订单:胰岛素等信号经 PI3K 与 AKT 解除 TSC 复合物对 Rheb 的抑制
- 电表:能量不足时 AMPK 直接踩刹车
- 氧气与应激:低氧、DNA 损伤等信号同样能关掉它
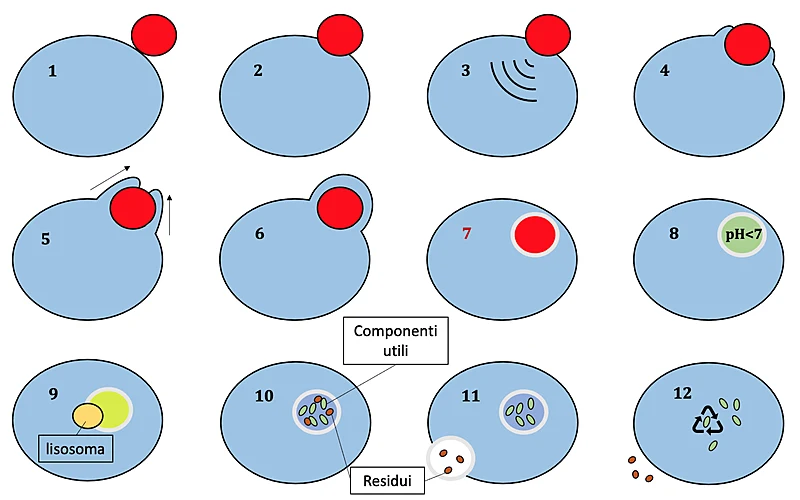
图2:蛋白质合成(翻译)过程示意(图片来源:Wikimedia Commons)
核心要点
1. mTORC1 是一个复合物,不是一个蛋白。核心是 mTOR 激酶,配上负责识别底物的 Raptor 和稳定结构的 mLST8。Raptor 决定了它只处理特定的一批底物,这让同一条激酶能被不同信号精确调用。
2. 它控制翻译的方式很直接。激活后,mTORC1 磷酸化两个关键底物:4E-BP 和 S6K。4E-BP 平时像盖子一样压住 eIF4E,磷酸化后盖子松开,翻译起始得以进行。被它优先放行的是一类叫 TOP mRNA 的分子,这些 mRNA 几乎全部编码核糖体蛋白。
3. 关掉它,细胞转入维护模式。mTORC1 活性下降时,自噬启动,细胞开始拆解损坏的蛋白和线粒体回收原料。这个"由建设转维护"的切换,是它与衰老关系最深的环节。雷帕霉素抑制 mTORC1,已在酵母、果蝇、小鼠中重复出延长寿命的结果。
4. TOP mRNA 这条支路有它自己的脾气。mTORC1 对 TOP mRNA 的控制,对雷帕霉素的抑制并不完全敏感。也就是说,存在绕过经典药物靶点的调节方式。2026 年 9 月发表于《自然》的果蝇研究发现,一个原本被当作储存蛋白的因子 Lsp2 会放大 mTORC1 在这条支路上的输出;敲除 Lsp2 后果蝇寿命显著延长,且繁殖能力不受影响。
容易混淆的地方
mTORC1 和 mTORC2 不是一回事。两者共用 mTOR 激酶,但 mTORC2 用 Rictor 代替 Raptor,底物和调控逻辑不同,主要负责细胞骨架与存活信号,也不被雷帕霉素急性抑制。看到"mTOR 被抑制"这种说法,先确认说的是哪个复合物。
"抑制 mTOR 就能长寿"是过度简化。长期抑制会带来伤口愈合变慢、免疫反应减弱等代价。实验动物里的寿命延长,往往依赖剂量、给药窗口和遗传背景,不能直接推到人身上。
自测
- 如果细胞氨基酸充足但能量耗尽,mTORC1 应该保持活跃吗?为什么?
- 为什么 TOP mRNA 的翻译会被单独拎出来调控,而不是所有 mRNA 一视同仁?
- 雷帕霉素抑制 mTORC1 后,细胞的自噬水平会上升还是下降?