植物激素:一株歪着长的草如何改写了农业
从达尔文的草苗到分子开关:植物没有神经,却靠五类激素指挥生长与成熟。
植物激素:一株歪着长的草如何改写了农业
热点内容 │ 生物学 │ 从发现史到分子机制与应用
把一盆幼苗搬到窗边,过不了几天,它的茎尖就会齐刷刷地扭向有光的那一侧。没有眼睛,没有神经,甚至没有一个能"思考"的大脑,植物却像做了某种判断一样,把生长的方向交给了光。这桩看似平常的事,曾让人类追问了将近一百年,也催生了一门全新学科——植物生理学。答案最终落在一类极其微量的物质上:植物激素。
它们不是肥料,不是营养,而是植物体内的"内参信号":自己合成、自己接收、浓度低到百万分之一就能发号施令。本文沿着三条线展开——人类是怎么发现它们的、它们在细胞里到底怎么干活、以及今天如何被我们用来种地。
一、发现史:一根胚芽鞘,追问了五十年
故事的开头,是一个被反复"砍头"的幼苗。
1880 · 达尔文父子的"感光"猜想
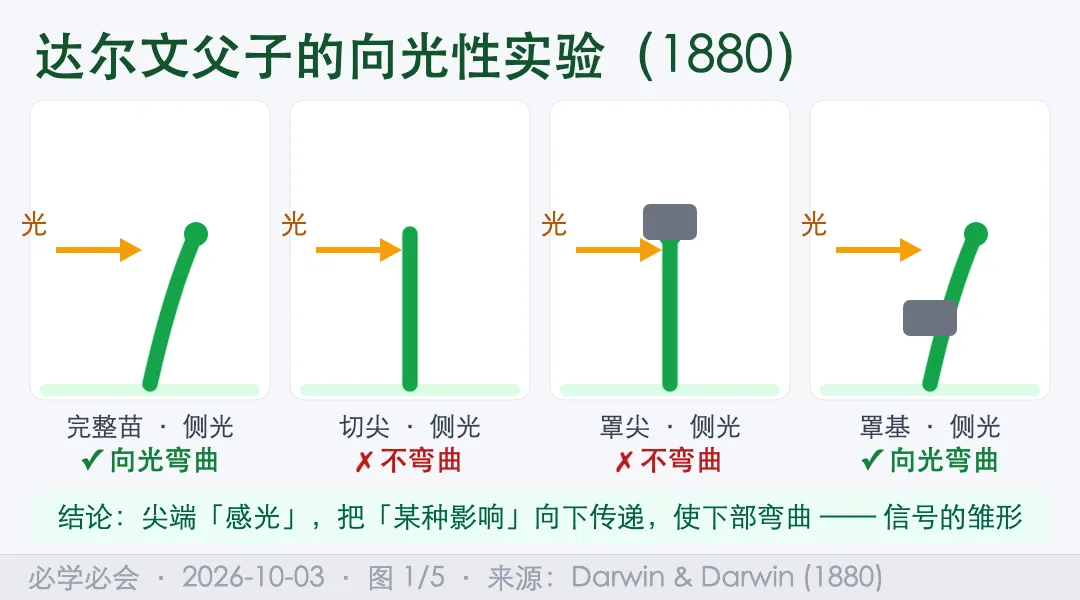
查尔斯·达尔文早已闻名于进化论,但晚年他和儿子弗朗西斯做了一组朴素的实验:把金丝雀草的胚芽鞘(种子萌发后包裹幼芽的鞘状结构)朝向单侧光,它就会弯曲。他们进一步发现——只要把胚芽鞘的尖端切掉,幼苗就不再向光弯曲;但若只罩住尖端、让下部裸露,它照样弯。达尔文父子的结论很克制:尖端感知了光,并把"某种影响"往下传到了弯曲的部位。他们没说清那是什么,却第一次把"植物会传递信号"这件事摆上了台面。
随后的几十年,接力棒在几个人手里传递:
- 1913 年,博伊森-詹森(Boysen-Jensen)用明胶片代替尖端与下部的"桥梁",幼苗仍能弯曲;换成云母片(不透光也不透水)则失效。说明传递的是某种可扩散的化学物质,而不是什么神秘的"光流"。
- 1919 年,帕尔(Paál)把一小块琼脂(一种海藻提取的凝胶)垫在去尖胚芽鞘的一侧,即便放在黑暗里,幼苗也朝对侧弯了——证明这物质能"偏着"堆积、制造不对称生长。
1928 · 温特用琼脂块"称"出了生长素
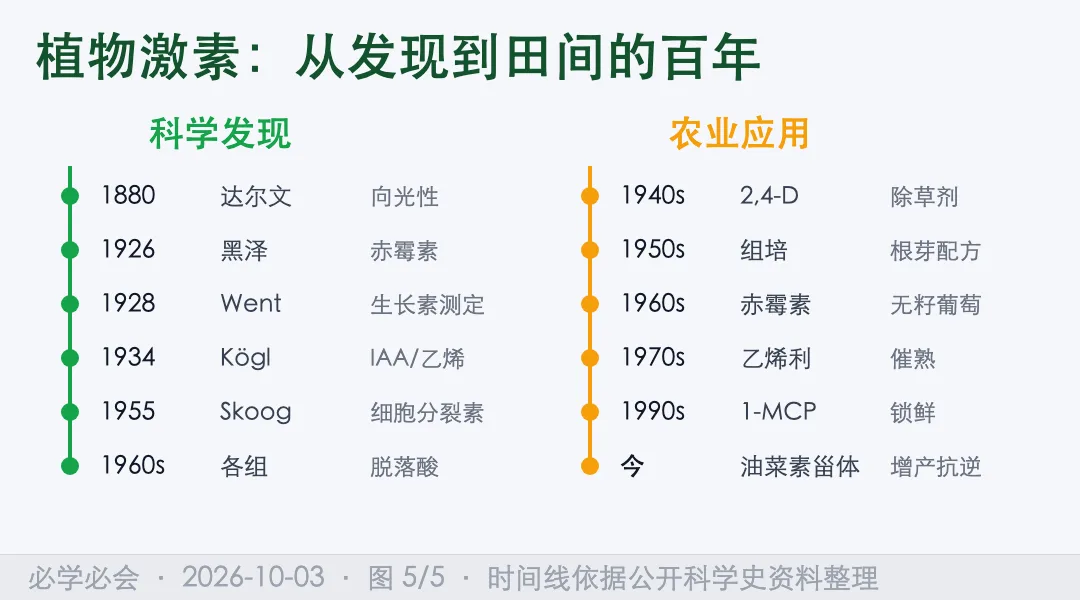
荷兰人F.W. 温特(Frits Went)做了关键一步:他把胚芽鞘尖端放在琼脂块上"浸润"一阵,再把这块琼脂移到去尖幼苗的一侧——幼苗照弯不误。更重要的是,他建立了一套"燕麦弯曲测定法":琼脂里物质越多,弯曲角度越大。这等于把一种看不见的物质,变成了可以量化的量。温特给它起了个名字:auxin(生长素),源自希腊语"auxein",意为"生长"。
1934 · 终于拿到化学分子:IAA
又过了六年,克格尔(Kögl)与哈根-斯米特(Haagen-Smit)从人尿和玉米油里真正分离、鉴定出了这种物质——一个含氮的环状分子,叫吲哚-3-乙酸(IAA)。从"某种影响"到明确的分子式,人类走了半个多世纪。
赤霉素:从一株"发疯"的水稻说起
生长素不是唯一的线索。1926 年,日本植物病理学家黑泽英一在调查水稻"恶苗病"时注意到:染病的稻苗会异常徒长、又细又高,最终倒伏枯死。病原菌是一种叫Gibberella fujikuroi的赤霉菌。他推测,病菌分泌了某种促生长的物质。十几年后,日本学者分离出这类物质,命名为赤霉素(gibberellin)。有趣的是,后来发现植物自己也会合成赤霉素——病菌只是"盗用"了宿主的语言。
细胞分裂素、脱落酸、乙烯、油菜素甾体
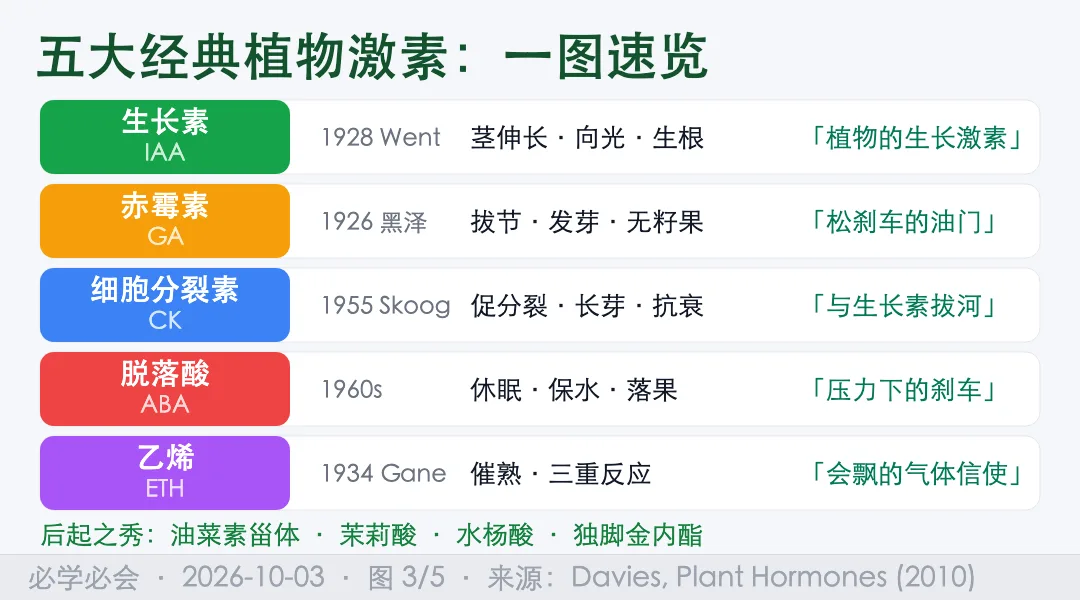
- 1950 年代,斯库格(Skoog)与米勒(Miller)从高压灭菌的鲱鱼精子 DNA 里偶然得到一种能促进细胞分裂的物质,叫激动素(kinetin);后来在玉米中找到了天然版本"玉米素(zeatin)",这一类统称细胞分裂素。
- 1960 年代,多个团队独立发现脱落酸(ABA):它让叶片脱落、种子休眠、气孔关闭,是植物的"压力荷尔蒙"。
- 乙烯是最特殊的一个——它是气体。1901 年俄国人涅柳博夫发现 streetlamp 漏出的气体让豌豆苗矮胖横生(后来的"三重反应");1934 年甘恩(Gane)确认这种气体就是乙烯,是植物自身释放的激素。
- 1970 年代,人们从油菜花粉里分离出油菜素甾体(brassinosteroid),这是第一类被确认的"甾体类"植物激素。
此后,茉莉酸、水杨酸、独脚金内酯等"后起之秀"陆续入列。植物激素,从孤零零的"生长素"一家,变成了一整套分子语言。
二、原理:植物细胞里的"收发报机"
无论哪一类激素,底层套路都相似:某处合成 → 转运到别处 → 被受体"认出" → 触发信号链 → 改变基因表达或离子流动 → 长出新的形态。差别只在"谁产生、谁接收、中间走哪条路"。下面挑几个最经典的机制拆解。
生长素①:极性运输,像单行道上的邮差
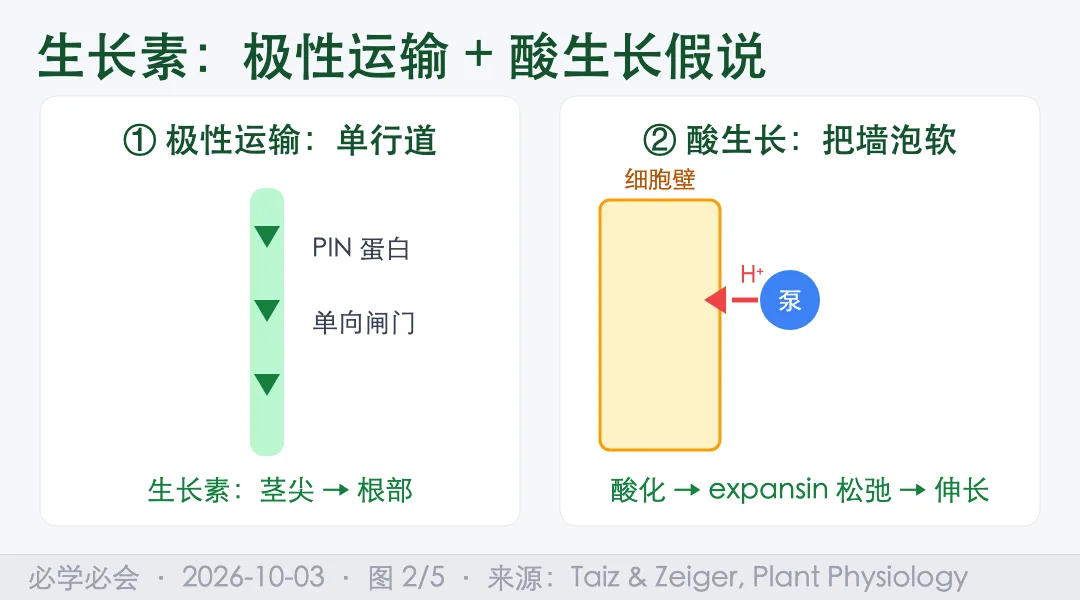
生长素在植物体内几乎只朝一个方向走——从茎尖往根部,这种"极性运输"靠细胞膜上的 PIN 蛋白当"单向闸门"(1990 年代才被锁定)。它解释了为什么切掉顶端,下方就接收不到信号、也不再向光弯。
生长素②:酸生长假说,用"酸"把细胞壁泡软
生长素如何让人"长高"?主流解释是酸生长假说:生长素刺激细胞膜上的质子泵,把 H⁺ 泵进细胞壁,让局部变酸;酸性环境激活 expansin(扩张蛋白),把细胞壁里交联的纤维"撬松",细胞顺势吸水膨胀、伸长。简单说——不是激素自己拉长了细胞,而是它下令把"围墙"先拆松一点。长期来看,生长素还调控 ARF/Aux-IAA 等转录因子,改变一大批生长基因的开与关。
赤霉素:把"刹车"摘掉的开关
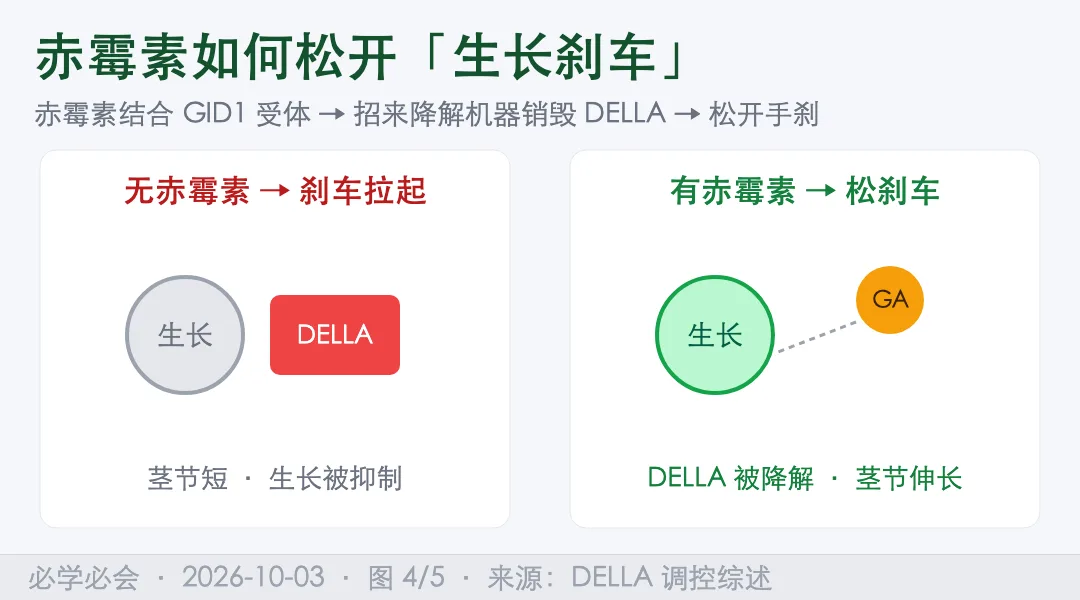
赤霉素的作用常被比作松开刹车。植物里有一类叫 DELLA 的蛋白质,名字拗口,功能却清楚:它平时压住茎的伸长,相当于"手刹"。赤霉素出现后,会结合 GID1 受体,招来降解机器把 DELLA 销毁——手刹一松,茎节就拉长。这就是为什么外喷赤霉素能让植株"窜个儿"。
其余几位:各管一摊
- 细胞分裂素:靠细胞膜上的组氨酸激酶受体(AHK)起步,走"双组分"信号通路,与生长素此消彼长地决定"长根还是长芽"。
- 脱落酸(ABA):干旱时,它结合 PYR/PYL 受体,促使保卫细胞失水、气孔关闭以保水;也维持种子休眠,让它"忍住别发芽"。
- 乙烯:在内质网上被 ETR1 受体捕获,经 EIN2/EIN3 传令,引发"三重反应"——茎变矮、变粗、横向生长,是植物对"被淹/被挤"的应答。
- 油菜素甾体:由细胞膜上的 BRI1 受体激酶识别,促进细胞伸长与抗逆。
更关键的是,这些通路并非各干各的,而是高度交叉对话(crosstalk):同一道生长指令,往往是多种激素"投票"后的结果。这也解释了为什么植物对外界反应如此稳健——没有单点故障。
三、应用:从培养皿到万亩农田
理解了机制,人类就开始"借用"这套语言。今天你餐桌上的不少食物,背后都有植物激素的影子。
组织培养:一根试管里的"配方"
斯库格和米勒早年就发现一条规律:在培养基里,生长素多、细胞分裂素少 → 长根;反过来 → 长芽;两者平衡 → 长愈伤组织。这条"比例法则"至今是植物组织培养、兰花快繁、转基因作物的根基。你买的许多组培苗,就是按这个"配方"喂大的。
除草剂:把"生长"变成毒药
人工合成的2,4-D是一类"假生长素"。双子叶杂草(如蒲公英)对高浓度生长素极敏感,吸收后会疯狂、失控地生长直至死亡;而单子叶庄稼(水稻、玉米)相对耐受。于是它成了广谱除草剂——同一套语言,剂量对了是信号,过量了是毒药。著名的"橙剂"就含 2,4-D 及其 cousins。
赤霉素:无籽葡萄与啤酒大麦
给葡萄花穗喷赤霉素,果实会拉长、籽退化,得到无籽又大粒的精品果(市面上的"无核白"很多得益于此);啤酒工业用它处理大麦,让发芽更整齐、酶活更高,糖化更省事。芹菜喷了也能增产增重。
乙烯:催熟与"锁鲜"的同一枚硬币
香蕉、番茄采摘时还是青的,运到目的地喷一点乙烯利(分解后释放乙烯)就集体变黄变软——这就是"催熟"。反过来,苹果、梨采收后自己放乙烯加速腐烂,于是用 1-MCP 这类物质堵住乙烯受体,把保鲜期从几天拉长到几个月。
其余各显神通
- 生长素类似物(NAA 等):泡插条促生根、喷果树防落果。
- 脱落酸:诱导葡萄着色、提高作物抗旱抗寒能力。
- 油菜素甾体:少量喷施可增产、增强对病虫和逆境的耐受。
从组织培养到催熟保鲜,植物激素已经是一条实打实的农业产业链,而非实验室里的好奇。
四、边界与误解:激素不是"魔法水"
谈到激素,最容易踩坑的是把几个概念混为一谈。
最常见的问题:"催熟的水果里有激素,小孩吃了会性早熟?"
——这是把植物激素、动物激素和性激素当成了一回事。植物激素(如乙烯、生长素)的作用靶点只存在于植物细胞,人体没有对应受体;且催熟使用的是植物自身也产生的物质,残留极低、进入人体后很快代谢掉。它与动物内分泌系统不在一个"语言体系"里,谈不上干扰人的性发育。
另一重边界是安全使用。前面提到的 2,4,5-T(早期除草剂)之所以被禁用,问题不在"激素"本身,而在生产中的二噁英类杂质。正规登记的植物生长调节剂,按推荐剂量使用是安全的。还有一点常被夸大:外源激素不是万能增产药。植物的反应是整张调控网络的结果,单靠喷一种物质,效果有限,过量反而伤苗。
换句话说,植物激素这门技术最有价值的地方,不是"替植物做决定",而是听懂它本来就有的语言,顺势帮它一把。
结语
从达尔文那株被切掉尖端的草苗,到今天能在原子层面看清的 DELLA 刹车、PIN 单行道,人类对植物激素的认识,是把"植物会感知、会决策"从诗意猜想,变成了可测量、可干预的科学。它提醒我们:一株看似安静的植物,内部其实日夜涌动着一套精密的分子对话——而我们,才刚刚学会旁听。
三个词,看懂这篇
① 极性运输:生长素在植物体内几乎只朝一个方向(茎尖→根)移动,靠细胞膜上的 PIN 蛋白当"单向闸门"。就像一条只能单向行驶的高速,决定了信号往哪送。
② DELLA 刹车:赤霉素通路里一类"抑制生长"的蛋白。赤霉素一来就把它降解掉,等于松开手刹,茎节伸长。一句话:赤霉素≈松刹车。
③ 三重反应:乙烯引发的典型形态变化——茎变矮、变粗、横向生长。是植物应对"被淹、被挤、受伤"时的一套固定姿态。
留个问题,评论区聊聊
既然"植物激素 ≠ 性早熟",那为什么国家仍对植物生长调节剂的使用有严格登记和残留标准?从"物质本身无害"到"可以放心吃",中间还差哪几道关?欢迎在评论区写下你的看法。
参考文献
- Darwin C., Darwin F. The Power of Movement in Plants. London: John Murray, 1880.
- Went F.W. Recherches sur les phytohormones / "Avena curvature test". 1928.
- Kögl F., Haagen-Smit A.J. Über die Chemie des Wuchsstoffs. Proc. Kon. Akad. Wet. Amsterdam, 1934.
- Kurosawa E. 植物ホルモンに就て(赤霉素的发现). 1926.
- Skoog F., Miller C.O. Chemical regulation of organ formation in plant tissues. Symp. Soc. Exp. Biol., 1957.
- Taiz L., Zeiger E. Plant Physiology and Development (6th ed.). Sinauer, 2015.
- Davies P.J. (ed.) Plant Hormones: Biosynthesis, Signal Transduction, Action! (3rd ed.). Springer, 2010.
评论 (0)
正文划词可点「问萝卜特」——自动发评论并由 AI 回复
加载评论中…